
Рефераты по рекламе
Рефераты по физике
Рефераты по философии
Рефераты по финансам
Рефераты по химии
Рефераты по хозяйственному праву
Рефераты по цифровым устройствам
Рефераты по экологическому праву
Рефераты по экономико-математическому моделированию
Рефераты по экономической географии
Рефераты по экономической теории
Рефераты по этике
Рефераты по юриспруденции
Рефераты по языковедению
Рефераты по юридическим наукам
Рефераты по истории
Рефераты по компьютерным наукам
Рефераты по медицинским наукам
Рефераты по финансовым наукам
Рефераты по управленческим наукам
психология педагогика
Промышленность производство
Биология и химия
Языкознание филология
Издательское дело и полиграфия
Рефераты по краеведению и этнографии
Рефераты по религии и мифологии
Рефераты по медицине
Контрольная работа: Обмін ліпідів
Контрольная работа: Обмін ліпідів
Обмін ліпідів
План
1. Перетворення ліпідів у харчовому тракті людини.
2. Окислення гліцерину
3. Окислення вищих жирних кислот
4. Обмін кетонових тіл
5. Біосинтез гліцерину
6. Біосинтез вищих жирних кислот
7. Біосинтез тригліцеридів
8. Біосинтез фосфоліпідів
1. Перетворення ліпідів у процесі травлення
Обмін ліпідів– багатоступеневий процес який складається з процесів травлення в харчовому тракті, всмоктування, транспортування в тканинах організму, внутріклітинного окислення і біосинтезу.
Поскільки ліпази (ферменти що розщеплюють жири) мають оптимум д рН=7.8–8.1, то процеси розщеплення ліпідів сторго локалізовані в кишково–шлунковому тракті.
|
Відділ харчового тракту |
Оптимум дії (рН) |
Процеси |
| Ротова порожнина | 6.5–7 | Процеси розщеплення відсутні |
| Шлунок | 1.5–2– | Розщеплення білків . Звільнення ліпідів з ліпопротеїдних ком-плексів. |
| 12–пала кишка та відділи тонкого кишечника | 7.5–8.5 | Основне місце розщеплення ліпідів. |
|
Зважаючи на гідрофобність ліпідів та водорозчинність ліпаз, необхідною умовою розщеплення ліпідів є їх диспергування (подрібнення) та емульгування (збільшення площі поверхні). Центральною речовиною в процесах розщеплення ліпідів є жовч – в‘язка рідина світло-жовтого кольору з гірким смаком та специ-фічним запахом. Міститься в жовчному міхурі. До складу входять жовчеві кислоти (холева та дезоксихолева), холестерин, вищ жирні кислоти, три-гліцериди фактори емульгування; ферменти і гормони – сприяють розщеп-ленню ліпідів; жовчні пігменти продукти розпаду гемоглобіну. Жовч забез-печує перистальтику тонкого кишечника нейтралізацію харчового хімусу – фактори диспергування, активацію ліполітичних ферментів, проникність стінок кишок, транспорт продуктів ліполізу, бактеріостатичну дію на кишкову мікро-флору, виведення ядів із організму. |
||
Розщеплення тригліцеридів відбувається за допомогою жовчі у 12-палому ки-шечнику та тонкій кишці під впливом ліпаз, що мають оптимум д рН=7.8–8.5, за слідуючою схемою:
CH2–O–C(O)–C17H35 CH2–OH 2C17H35COOH
 CH–O–C(O)–C17H33 ліпаза CH–OH + C17H33COOH
CH2–O–C(O)–C17H35 CH2–OH


 В 12-палій кишці, в
основному, розщеплюються фосфогліцериди під впливом фосфоліпаз (А,В,С,Д).
Останні характеризуються строгою специфічністю своєї дії: Фосфоліпаза
А–каталізує розрив складноефірних зв‘язків між гліцерином та ненасиченими
кислотами, фосфоліпаза В– між гліцерином і насиченою кис-лотою,
фосфоліпаза С–між гліцерином і фосфорною кислотою а фосфоліпаза Д розщеплює тільки
фосфохолін.
CH2–O–C(O)–C17H35 CH2–O–С(О)–C17H35
CH–O–C(O)–C17H33 фосфоліпаза А, Н2О CH–OН + C17H33COОН


 CH2–O–P–O–CH2–CH2–N(CH3)3 СН2–О–Р–О–СН2–СН2–N(CH3)3


 HO O HO O
CH2–O–C(O)–C17H35 СН2–ОН
 CH–OH фосфоліпаза В, Н2О СН–ОН + C17H35COOH


 CH2–O–P–O–CH2–CH2–N(CH3)3 СН2–О–Р–О–СН2–СН2–N(CH3)3

 HO O HO O
 CH2–OH
 фосфоліпаза
С, Н2О CH–OH+HO–P–O–CH2–CH2–N(CH3)3
 CH2–OH фосфоліпаза
Д, Н2О Н3РО4 + НО–СН2–СН2–N(CH3)3
Стериди під дією ферменту холестеринестерази розпадаються до стеринів і вищих жирних кислот згідно схеми:
В результаті ферментативного розщеплення ліпідів, в порожнині тонкої кишки утворюються на 80 % продукти повного гідролізу (гліцерин, вищі жирні кислоти, азотисті основи і фосфорна кислота) та 20 % продукти часткового гідролізу (ди– і тригліцериди).
Із просвіту тонкого кишечника продукти розщеплення потрапляють у клітини епітелію . Даний процес проходить із затратами енергії. Необхідно враховувати що: гліцерин, гліцеринфосфорні кислоти, азотисті основиі фосфорна кислота добре розчинні у воді – легко проникають в епітеліальні клітини; вищі жирн кислоти, холестерин, дигліцериди – погано розчиняються у воді. В епітеліальн клітини потрапляють у комплексі з жовчевими кислотами, утворюючи водороз-чинн холеїнові кислоти.
В епітеліальних клітинах тонкого кишечника відбувається розпад холеїнових кис-лот, синтез специфічних для організму ліпідів та процеси синтезу транспортних форм для специфічних ліпідів (поскільки більша їх кількість гідрофобна). Серед транспортних форм специфічних ліпідів виділяють слідуючі:
 –Ліпопротеїди – рухливий комплекс фосфатидів з білками;
 –ліпопротеїди
рухливий комплекс холестерину та його ефірів з білками;
хіломікрони – рухливий комплекс діаметром 150–200 нм, що складається з ново-синтезованих (специфічних) тригліцеридів і вітамінів, зовнішньою обгорткою яких є білкова молекула.
На відміну від вуглеводів котрі відразу потрапляють у кров, транспортн форми ліпідів розносяться по організму завдяки лімфатичній системі. При контакті з кровоносними судинами останні під впливом спеціальних ферментів розпада-ються на ліпідний та білковий компоненти. Білковий компонент током лімфи по-вертається до клітин епітелію тонкого кишечника де утворює нові транспортні форми, а ліпідна фракція током кров розноситься до клітин організму де відбу-ваються процеси х внутріклітинного окислення.
При виконанні інтенсивної, довготривалої м‘язевої роботи енергетичні затрати організму покриваються за рахунок енергії окислення ліпідів.
2. Окислення гліцерину
Проходить у дві стадії за участью різних ферментних систем.
1.Утворення гліцеринфосфорної кислоти за допомогою фермену гліцеролкінази:


 CH2–OH CH2–OH

 CH–OH АТФ АДФ CH–OH

 CH2–OH CH2–O–P=O
 HO OH
2. Утворення диоксіацетонфосфату та фосфогліцеринового альдегіду за допомо-гою НАД-залежних та ізомеразних ферментних систем:
CH2–OH СH2–OH HC=O
CH–OH НАД+ НАДНН C=O ізомераза HC–OH


 CH2–O–P=O CH2–O–P=O HC–O–P=O
HO OH HO OH H HO OH
гліцеринфосфорна кислота диоксіацетонфосфат фосфогліцериновий альдегід
ОТЖЕ: енергетичний ефект окислення гліцерину до ФГА становить 2 молекули АТФ, а повного окислення до вуглекислого газу і води через ФГА – 22 молекули АТФ. Фосфогліцериновий альдегід – спільний метаболіт для ліпідного вугле-водневого обмінів – використовуються для біосинтезу жирів, фосфогліцеридів стеридів що проходять у печінці.
3. Окислення вищих жирних кислот
В основі сучасних уявлень про механізм біологічного окислення вищих жирних кислот лежить теорія запропонована Кноппом у 1904 році. Він експериментально довів що, окислення ВЖК має характер поступового, циклічного 6-стадійного процесу.
Перші дві стадії – підготовчі, полягають у активації молекул ВЖК з утворенням їх активованої ацильної форми, ацил–КоА.
Наступні чотири – циклічні, являють собою власне окислення ацил–КоА з утво-ренням ацетил–КоА, яка доокислюється в циклі реакцій трикарбонових кислот (циклі Кребса) до вуглекислого газу і води.
Підготовча стадія:


 C13H27 С13Н27 C13H27
 CH2 АТФ Н4Р2О7 СН2 НS–KoA CH2

 CH2 СН2 CH2 + АМФ


 COOH С=О О C=O


 О–Р–О–А S–KoA
ОН
пальмітинова кислота пальмітил-аденілат пальмітил-КоА
Циклічне окислення:


 C13H27 С13Н27 C13H27 С13H27
CH2 ФАД+ ФАДНН СН HOH CH–OH НАД+НАДНН C=O
 CH2 СН CH2 CH2


 C=O С=О C=O C=O
S–KoA S–KoA S–KoA S–KoA
пальмітил-КоА ненасичена форма оксиформа кетоформа
пальмітил-КоА пальмітил-КоА пальмітил-КоА

 C13H27 CH3

 C=O + C=O
S–KoA S–KoA
ацильний залишок ацетил–КоА
Ацильний залишок далі доокислюється в 4-х стадійному циклі до повного роз-паду молекули на ацетил–КоА, який доокислюється в циклі Кребса.
Повне окис-лення пальмітинової кислоти з утворенням восьми
молекул ацетил–КоА прохо-дить за сім раз
чотирьохстадійного циклу з виділенням 7 5=35
молекул АТФ. При окисленні однієї молекули ацетил–КоА в циклі Кребса
виділяється 12 моле-кул АТФ, а поскільки з молекули
пальмітинової кислоти утворюється 8 молекул ацетил–КоА, то енергетичний ефект
х окислення становить 8
 12=96
молекул АТФ. Загальний енергетичний ефект окислення однієї молекули
пальмітинової кислоти становить 96
 + 35 –1
= 130 молекул АТФ.
Поскільки при окисленні ВЖК перетворень зазнає  –вуглецевий атом кислот-ного ланцюга, то процес отримав назву
 –окислення вищих жирних
кислот. В основному проходить в клітинах печінки.
Активне окислення жирів приводить до накопичення ацетил–КоА (кількість
утвореного ацетил–КоА значно більша ніж можливість його окислення в цикл
Кребса). Надлишкові кількості ацетил–КоА вступають між собою у різноманітн
взаємодії, що приводить до утворення кетонових тіл (ацетооцтова,  –гідрокси-масляна кислоти,
ацетон, вихідні форми для синтезу холестерину).
4. Обмін кетонових тіл


 O


 CH3–C=O + CH3–C=O CH3–C–CH2–C=O + HS–KoA
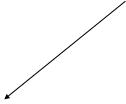
 S–KoA S–KoA S–KoA
ацетил–КоА ацетил–КоА ацетоацетил–КоА
–H2O
–HS–KoA
O
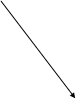
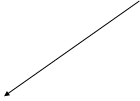 CH3–C–CH2–C=O
OH
(ацетооцтова кислота)
–CO2 НАДНН НАД+
CH3–C–CH3 CH3–CH–CH2–COOH
O OH
ацетон  –гідроксимасляна кислота
Ацетооцтова і  –гідроксимасляна
кислоти–нормальні проміжні продукти обміну ліпідів. Окислюючись в міокарді та
скелетних м‘язах являються важливими енер-гетичними
субстратами.
Ацетон– проміжний продукт при патологічному обміні ліпідів (голодування, цукровий діабет). Підвищений рівень кетонових тіл у крові приводить до аци-дозу (зміщення активної реакції у «кислу сторону»).
Ацетил–КоА є також вихідною речовиною для синтезу ізопреноїдів, а значить стероїдів. Біосинтез стеринового скелету поділяється на три етапи: синтез мева-лонової кислоти; синтез сквалену; перетворення сквалену в холестерин.
1.Синтез мевалонової кислоти. Дві молекули активованої оцтової кислоти (аце-тил–КоА) об‘єднуються утворюючи ацетоацетил–КоА:

 O


 CH3–C=O + CH3–C=O CH3–C–CH2–C=O +
HS–KoA
S–KoA S–KoA S–KoA
ацетил–КоА ацетил–КоА ацетоацетил–КоА
Розгалудження ланцюга відбувається при конденсації молекули ацетоацетил–КоА із слідуючою молекулою ацетил–КоА:


 О
H3C OH O


 CH3–C–CH2–C=O
+ CH3–C=O –HS–KoA HOOC C C
S–KoA S–KoA CH2 CH2 S–KoA
Утворена  –окси–
 –метилглутарова
кислота в умовах відновлення двома моле-кулами НАДНН відщеплює HS–KoA, в результаті чого карбонільна група пере-творюється в спиртову з утворенням мевалонової кислоти, яка є ключовою спо-лукою для синтезу
зопреноїдів:


 H3C OH
O H3C OH


 HOOC C C 2НАДНН 2НАД HOOC C CH2
 CH2 CH2 S–KoA –НS–KoA CH2 CH2 OH
3,5-диоксі-3-метилвалеріанова кислота
(мевалонова кислота)
2.Утворення активного ізопрену та його перетворення в сквален. Послідовне фосфорилювання мевалонової кислоти молекулами АТФ приводить до утво-рення «активного ізопрену» (ізопентенілпірофосфату). При конденсац зопенте-нілпірофосфату з 3,3–диметилалілпірофосфатом утворюється геранілпірофосфат, дві молекули якого утворюють сквален шляхом відновлювально конденсації в присутності НАД-залежних дегідрогеназних систем. Дана стадія протікає в роз-чині цитоплазми за відсутності кисню:


 H3C OH


 HOOC C CH2 АТФ АДФ HOOC C CH2
 CH2 CH2 OH CH2
CH2 OФ
5-фосфомевалонова кислота


 H3C OH


 HOOC C CH2 АТФ АДФ HOOC C CH2
 CH2 CH2 OФ CH2
CH2 O–Ф–Ф
5-пірофосфомевалонова кислота


 H3C OH
H3C


 HOOC C CH2 АТФ АДФ C CH2
 CH2 CH2 OФ–Ф –СО2
Н2О CH2 CH2 O–Ф–Ф
ізопентенілпірофосфат

 H3C
H3C


 C CH2 C CH2
 CH2 CH2 OФ–Ф CH3
CH O–Ф–Ф
ізопентенілпірофосфат 3,3-диметилалілпірофосфат

 H3C H3C


 C CH2 + C CH2 –Н4Р2О7
CH2 CH2 OФ–Ф CH3 CH O–Ф–Ф
ізопентенілпірофосфат 3,3-диметилалілпірофосфат
3. Перетворення сквалену в холестерин. На стад окислення відбувається цик-лізація і утворюються ланостерин і холестерин. При цьому відбувається наси-чення подвійних зв‘язків і окислювальне відщеплення метильних груп при четвертому чотирнадцятому атомах вуглецю у вигляді СО2. Циклізація сквалену в структуру що нагадує стероїди, як і послідуючі реакції, протікає на поверхн ендоплазматичного ретикулуму:
Біосинтез стероїдних гормонів
Вихідною сполукою в біосинтезі стероїдних гормонів є холестерин. Із ньо-го послідовно утворюються прегненолон і прогестерон. Прогестерон ключова сполука в синтезі всіх стероїдних гормонів. Сам по собі володіє значною біоло-гічною активністю як гормон жовтого тіла (гестаген). Прегнандіол, що виділя-ється із сечею,– неактивний продукт розпаду прогестерону.
Біосинтез стероїдних гормонів, що починається з прогестерону, каталізу-ється стереоспецифічними ферментами (гідроксилазами). В назву гідроксилази входить номер який вказує номер вуглецевого атома по якому відбувається при-єднання гідроксильної групи.
Відщеплення бокового ланцюга у молекулі прогестерону приводить до утворення андростендіону, при відновленні якого утворюється тестостерон.
Тестостерон і його аналоги володіють анаболічною активністю. Використанню цих сполук в якості лікувальних анаболічних препаратів зашкоджує їх чітко ви-ражена андрогенна дія.
В зв‘язку з цим було синтезовано нові стероїдні сполуки, близькі по структурі до андрогенів, що володіють вибірковою анаболічною активністю при маловира-женій андрогенній дії. Вони отримали назву «анаболічні стероїди».
Найбільш характерною властивістю анаболічних стероїдів є їх здатність до сти-